2

21
1

文字

分享

2
21
1

世上最早的「小農」在這裡!菌蠹蟲與真菌缺一不可的共生農業

活躍星系核_96
・2020/09/25 ・2967字 ・閱讀時間約 6 分鐘 ・SR值 545 ・八年級

  • 文/黃尹則|佛羅里達大學博士,現任京都大學博士後研究員。喜歡從共生學的角度來看生物。貓奴。

大約一萬兩千年前,世界各地的人類不約而同地從狩獵、採集的生活型態轉型成遊牧、群聚的農業聚落。農業行為的出現,深深地影響了人類發展的腳步;人口的急遽增長、專業分工的產生(有更多時間去做找食物以外的事情),間接導致社會結構的出現,爾後組成大型聚落甚至是政府。

因此,發展出農業行為是人類演進過程中的重大事件。

但相較於其他生物,其實人類在這場「農業遊戲」中是很晚才加入的玩家。

約一億年前,一群住在樹皮以下、身形不到一公分的小甲蟲就已經開始種植他們的真菌作物。這類甲蟲稱為菌蠹蟲 (Ambrosia beetle),而其真菌作物稱為菌蠹蟲真菌 (Ambrosia fungus)。

菌蠹蟲和菌蠹蟲真菌之間是一種絕對 (obligate)、互利 (mutualistic) 的共生關係。真菌是菌蠹蟲的唯一食物來源,在沒有真菌的情況下,菌蠹蟲無法存活。而菌蠹蟲是這些真菌在環境中傳播的唯一交通工具,自然界中,菌蠹蟲真菌只存在於菌蠹蟲的棲息環境中。兩者相依相存、缺一不可。
-----廣告,請繼續往下閱讀-----
農業行為是人類演進過程中的重大事件。圖/pixabay

絕大部分的菌蠹蟲棲息於新鮮剛死亡或是極度衰弱的的樹木,只有極少數的種類會攻擊健康的樹木(例如造成美國酪梨產業嚴重危害的幾種菌蠹蟲)。

樹木在衰弱時,它們會釋出酒精及其他化學物質,菌蠹蟲就是藉由這些揮發物質來選擇合適的樹木寄主。當先驅的菌蠹蟲飛到合適的樹木上,找到自己喜歡的位置後,便開始用其強壯的下顎 (mandible) 和全身的力量突破樹皮,深入到木質部挖掘出屬於自己的家。

菌蠹蟲的家因為長得很像「隧道」,英文便直接用 gallery 來描述菌蠹蟲的棲所。在挖掘隧道的同時,菌蠹蟲一邊產卵、一邊將共生真菌接種在隧道壁上,當卵孵化時,共生真菌已培養成豐盛的真菌花園 (fungal garden),以提供幼蟲生長發育時所需營養。

當幼蟲成長、化蛹、再蛻變成新一代的成蟲後,便攜帶其共生真菌,離開隧道去尋找下個合適的樹木寄主。單一世代的生活史大約只需要一到三個月的時間。

-----廣告,請繼續往下閱讀-----
菌蠹蟲的隧道 (gallery),成蟲於母隧道,側邊的蛹室內為成長中的幼蟲,隧道壁上白色層為其共生的菌蠹蟲真菌。圖/Jiri Hulcr,佛羅里達大學

如同我們所熟悉的人類農業,菌蠹蟲與共生真菌的演化過程中也包含了「馴化」、「性狀管理」、和「病害控制」等複雜行為。

農業的起點:馴化事件

雖然至今仍無法窺探菌蠹蟲和共生真菌實際的馴化過程,科學家還是能透過基因親緣樹來推斷演化歷史上共發生過幾次「馴化事件」。現今已知的菌蠹蟲約 3400 種,而菌蠹蟲真菌則有 3000 餘種。

事實上,菌蠹蟲並非單一種昆蟲,他們泛指小蠹蟲亞科 (Scolytinae) 和長蠹蟲亞科 (Platypodinae) 內具有農業行為的多個類群。根據小蠹蟲的親緣樹推斷,其演化過程中至少有 12 至 16 次的演化支系 (lineage) 獨立演化 (indepedently evolved) 出農業行為。同樣的,菌蠹蟲真菌也不是單一種真菌,而是一群與菌蠹蟲形成共生關係的真菌。在真菌的親緣樹上,目前已知至少發生了 13 次的馴化事件。

看到這裡,聰明的你有發現農夫(菌蠹蟲)與作物(菌蠹蟲真菌)間演化次數的不同嗎?沒錯,菌蠹蟲與共生真菌並不完全是一對一的關係。

-----廣告,請繼續往下閱讀-----

有些菌蠹蟲只攜帶一種真菌、有些則攜帶多種真菌;有些菌蠹蟲真菌只被一種菌蠹蟲豢養、有些則會出現在不同種的菌蠹蟲的隧道裡。但神奇的是,無論是一對一或者一對多的關係,這樣的共生關係在多數環境中是穩定的(維持一對一或一對多)。他們是如何做到的呢?這就要提到他們精緻的管理模式。

性狀管理

在長達一億年共同演化的過程中,菌蠹蟲和真菌為了彼此的共生關係,各自發展出了精巧的構造。菌蠹蟲為了有效攜帶共生真菌的孢子,在外骨骼上或是在體內「挖」出了一種特殊構造──儲菌器 (mycangium)──來確保每一世代的成蟲所攜帶的真菌都是同一種類,而非環境中其他種隨機的真菌。

科學家透過實驗證明,發現某些儲菌器具有「選擇」正確共生真菌的能力,而某些則具有比較大的彈性能容忍「相近但不同種」菌蠹蟲真菌入住的現象。
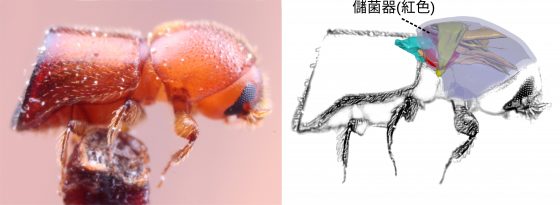
菌蠹蟲的儲菌器。圖/You Li,佛羅里達大學

而從真菌的角度來看,首先要先知道,作為傳播用途的真菌孢子體型一般不會太大;裡面所含的養分僅需足夠讓其發芽、長出菌絲,直到找到新的營養來源即可。部份菌蠹蟲真菌在數千萬年的演化過程中,被選擇出能產生不成比例的巨大孢子類型。這些巨大孢子有較多的空間來儲存醣類、脂肪、胺基酸等昆蟲成長所需的營養。

-----廣告,請繼續往下閱讀-----

但目前在性狀管理的機制上,例如儲菌器如何維持專一性的共生關係(物理性或化學性?)、菌蠹蟲真菌的營養性狀是如何被選擇的,是目前科學家們尚未釐清的問題。

病害控制:社會性分工與世代交替

與人類的農業相似,菌蠹蟲與其真菌花園也受到許多潛在病害的威脅。這些「病原」可能來自於先驅菌蠹蟲體表上的伺機性微生物(例如非共生真菌、細菌、線蟲、蟎等),還有會獵食菌蠹蟲的天敵昆蟲等。

那菌蠹蟲如何去對抗這些威脅呢?前面有提到,人類因為農業行為的產生,進而發展出複雜的社會結構。同樣的,部份種類的菌蠹蟲也具有社會性特徵:有世代重疊的現象(族群內同時有不同階段的個體)、共同育幼的行為、分工制度。

科學家發現,某些菌蠹蟲為了維持隧道內的清潔,幼蟲負責將排遺滾成球狀 (balling)、成蟲將隧道中的木屑、死亡的個體推至洞口 (shuffling)、最後由負責堵住洞口的成蟲將廢棄物排出。同時,這些負責堵在洞口的成蟲肩負了抵擋天敵入侵的責任。此外,當族群內大多數的成蟲離巢或死亡後,其真菌花園很快就會被其他伺機性真菌及細菌所污染並且取代,進而導致整個隧道內族群的瓦解。

-----廣告,請繼續往下閱讀-----

因此,即使菌蠹蟲單一世代的生活史很短(大多僅一至三個月),仍需要家族中所有成員的分工合作才能確保整個族群的延續。

了解菌蠹蟲與真菌共生特性的重要性在哪?

菌蠹蟲與菌蠹蟲真菌的共生關係,不管從生物學的角度或者是應用方面都有很高的研究價值。

生物學方面,由於演化過程中它們多次獨立演化出農業行為,透過比較這些獨立發生的事件,可以幫助我們釐清昆蟲與真菌共生關係是如何開始的。

應用方面,雖然攻擊健康樹木的菌蠹蟲種類很少,但幾乎都造成生態系等級的危害。例如前面提到危害美國酪梨產業的菌蠹蟲,其中一種就是從台灣被引進美國的入侵種。了解菌蠹蟲和共生真菌的生態,將有效幫助我們控制他們所造成的危害。

-----廣告,請繼續往下閱讀-----

引用文獻

  1. Johnson AJ, McKenna DD, Jordal BH, Cognato AI, Smith SM, Lemmon AR, et al. Phylogenomics clarifies repeated evolutionary origins of inbreeding and fungus farming in bark beetles (Curculionidae, Scolytinae). Mol Phylogenet Evol 2018; 127: 229–238.
  2. Vanderpool D, Bracewell RR, McCutcheon JP. Know your farmer: Ancient origins and multiple independent domestications of ambrosia beetle fungal cultivars. Mol Ecol 2018; 27: 2077–2094.
  3. Hulcr J, Stelinski LL. The ambrosia symbiosis: From evolutionary ecology to practical management. Annu Rev Entomol 2017; 62: 285–303.
  4. Skelton J, Johnson AJ, Jusino MA, Bateman CC, Li Y, Hulcr J. A selective fungal transport organ (mycangium) maintains coarse phylogenetic congruence between fungus-farming ambrosia beetles and their symbionts. Proceedings of the Royal Society B: Biological Sciences 2019; 286: 20182127.
  5. Huang Y-T, Skelton J, Hulcr J. Lipids and small metabolites provisioned by ambrosia fungi to symbiotic beetles are phylogeny-dependent, not convergent. ISME J 2020; 14: 1089–1099.
-----廣告,請繼續往下閱讀-----
文章難易度
所有討論 2
活躍星系核_96
776 篇文章 ・ 130 位粉絲
活躍星系核(active galactic nucleus, AGN)是一類中央核區活動性很強的河外星系。這些星系比普通星系活躍,在從無線電波到伽瑪射線的全波段裡都發出很強的電磁輻射。 本帳號發表來自各方的投稿。附有資料出處的科學好文,都歡迎你來投稿喔。 Email: contact@pansci.asia

0

0
0

文字

分享

0
0
0
不是不會髒,而是更難沾:耐污馬桶的表面科學
鳥苷三磷酸 (PanSci Promo)_96
・2026/09/22 ・3364字 ・閱讀時間約 7 分鐘

本文與 Panasonic 合作,泛科學撰文 

●以下科學研究內容作為知識分享,不直接與Panasonic A La Uno全自動洗淨馬桶產品功能連結

在做家務的痛苦排行榜上,「刷馬桶」絕對名列前茅。明明天天都在沖水,但過不了幾天,馬桶內壁邊角總會浮現黃黃的水垢、角落發黑的霉斑,甚至是那些刷掉又長出來的粉紅色污垢(黏質沙雷氏菌)。

許多市售衛浴設備常標榜「神奇抗污」或「永久不沾」,讓人誤以為安裝後便能永保潔淨。然而從材料科學的角度來看,世上並無能使污垢憑空消失的魔法。所謂「耐污」的實質機制,並非打造完全不沾染髒污的材質,而是調整表面的物理與化學屬性,使水垢和微生物難以強力附著。一旦降低了污垢與內壁之間的附著力,透過日常水流沖刷,便能輕易地將髒污帶走。

-----廣告,請繼續往下閱讀-----

為什麼污垢「黏不住」? 

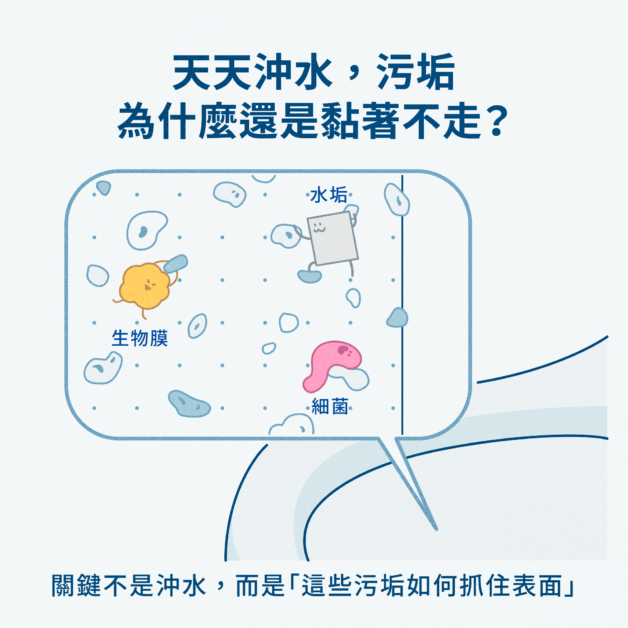
要搞懂為什麼某些特殊表面能做到「耐污」,我們得先像偵探一樣,拆解馬桶裡的髒污究竟是怎麼「抓緊」材料表面的。馬桶內壁的污垢主要有兩大難纏的元兇:

  1. 水垢與礦物沉積*1:我們日常使用的自來水中含有鈣、鎂等金屬離子。當水滴在表面經歷反覆的濕潤與蒸發乾燥循環時,這些離子會逐漸結晶析出,變成硬度極高、緊緊「卡」在微觀縫隙裡的礦物質水垢。
  2. 生物膜與有機物*2:包含尿液中的無機鹽、油脂殘留,以及細菌入侵後分泌出像超強膠水一般的聚合物,所組成的黏滑防禦大本營。
關鍵不是沖水,而是「這些污垢如何抓住表面」

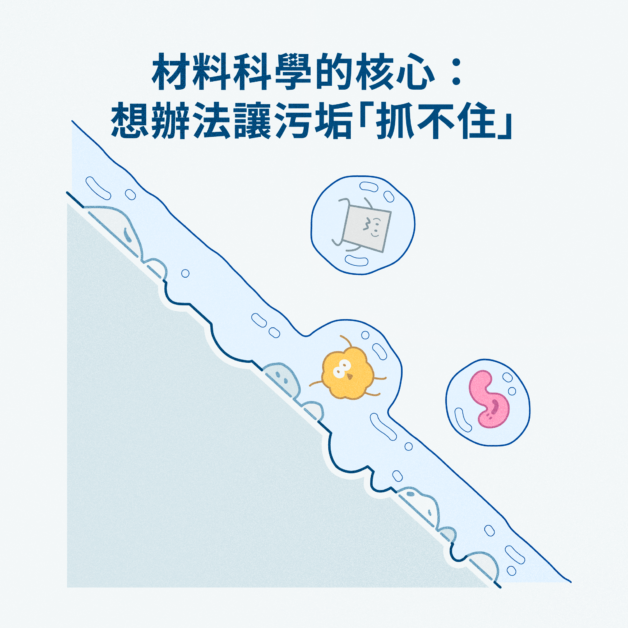
這兩大類污垢想要在材料上「落腳」,前提是它們必須能在表面找到足夠的附著點與黏合力。那麼,材料科學家是如何讓這些髒污「站不穩」的呢?答案就藏在「表面能(Surface Energy)」與「濕潤性(Wettability)」這兩個核心概念中。

當我們把水滴在某個表面上時,水滴會聚成一顆圓滾滾的水珠,還是迅速攤平開來?這取決於表面的特性:

  • 疏水路線(Hydrophobic)*1:具備低表面能的疏水表面,能顯著減少水分子或污染物與表面之間的極性作用力與氫鍵。水滴在這種表面上會因為表面張力而收縮成水珠,當水珠滾動滑落時,就能順便把表面的灰塵與礦物質顆粒帶走,這就是著名的「自清潔效應」。
  • 親水路線(Hydrophilic / Superhydrophilic)*2:相反地,極度親水的超親水表面則會強烈地吸引水分子,在材料最外層形成一層薄薄的「水化層(Hydration Layer)」。這層水化層就像是實體的液體盾牌,讓油污、蛋白質或細菌無法直接接觸到材料基底,只能漂浮在水膜上方。

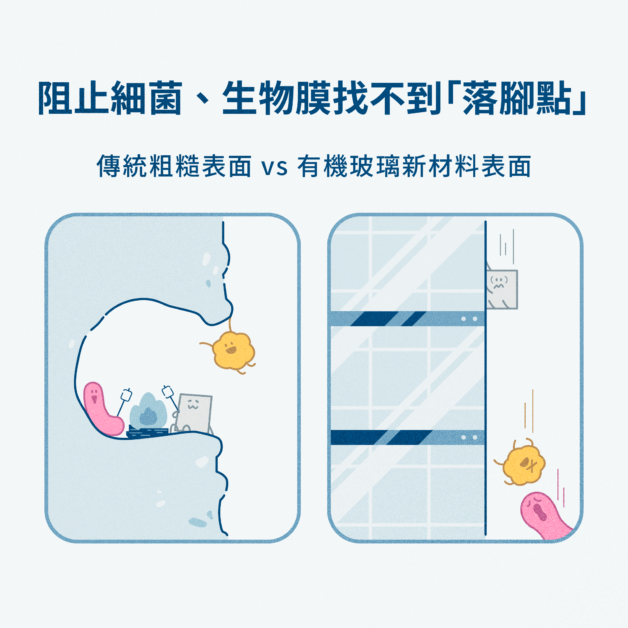
如果要用攀岩來比喻:傳統粗糙的表面就像是有許多凹槽的攀岩牆,髒污就像攀岩者,需要找到落腳點並用力撐住才能攀附;而我們做的是抽掉把手點,或是在把手上塗上潤滑油,讓髒污找不到施力點,自然難以停留。

-----廣告,請繼續往下閱讀-----
材料科學的核心:想辦法讓污垢「抓不住」

不給細菌「握手」的機會

解決了水垢,下一個更棘手的對手是「細菌」。

馬桶內壁那些黑黑粉粉、摸起來滑滑的污垢,在微生物學中被稱為「生物膜(Biofilm)」。細菌並不是孤立生長的,當單顆細菌落在表面後,如果覺得環境舒適,它就會開始分泌胞外聚合物(EPS),這是一種天然的超強膠水。細菌們用這種膠水把自己與同伴緊緊黏在一起,並築起堅固的防禦堡壘,這時一般的沖水就很難把它們沖洗乾淨了。

根據《Nature Communications》與《Microsystems & Nanoengineering》的學術期刊研究指出,要阻止生物膜形成,除了化學上的抗菌,材料的「表面微幾何結構」扮演了至關重要的角色。

材料科學領域中有一個著名的「附著點理論(Attachment Point Theory)」:

-----廣告,請繼續往下閱讀-----
  1. 粗糙與微孔洞表面:如果材料表面存在許多微小的裂縫、氣孔或微米級凹洞,細菌(體積通常約 1 到 3 微米)就會興高采烈地鑽進這些小凹槽裡。這些凹槽不僅提供了極佳的機械咬合支點,還能幫細菌擋掉水流的沖刷。
  2. 極致平滑與微結構表面:相反地,如果材料表面做到極致平滑,完全沒有微米級的缺陷;或者反過來設計出尺寸遠小於細菌的奈米結構,細菌的足跡構造(如鞭毛或纖毛)就無法在表面找到穩固的「接觸附著點(Contact Points)」。

當細菌發現自己在這個表面上連「手都握不緊」、隨時會被水流吹走時,它就無法順利定殖並分泌膠水築巢。此外,現代衛浴結構在設計時,也越來越強調「一體成形」與「無接縫工藝」。消除接縫與死角,等於直接拔除了細菌與水垢最喜歡的避風港。

阻止細菌、生物膜找不到「落腳點」

當材料、結構與流體科技組隊聯防 

了解了材料化學與微觀幾何,我們就能勾勒出一座現代耐污馬桶的完整防禦體系:【材料層(低附著力)】+【結構層(無縫平滑)】+【動態流體層(泡沫與水流剪切力)】= 高效清潔!

以市面上備受矚目的 Panasonic A La Uno 全自動洗淨馬桶為例,就是將材料科學、結構工程與流體力學發揮到極致的典型代表:

1. 材料層:有機玻璃系新素材

A La Uno 全自動洗淨馬桶採新開發的「有機玻璃系新素材」(以壓克力高分子為基礎研發的衛浴專用材料,這類高分子成形技術亦被廣泛運用於大型水族館高壓觀景窗與飛機機艙罩)。這種材料表面具備極佳的疏水性與耐水垢特性,水滴不易長時間攤平停留;材質堅固、不易破裂,耐刮、不易造成細小傷痕。通過實驗測試,這種素材配合泡沫洗淨,在沖洗後能有效沖刷掉高達 99.99% 的大腸桿菌,從源頭阻斷細菌定殖。

-----廣告,請繼續往下閱讀-----

2. 結構層:無接縫工藝與三重防濺防護

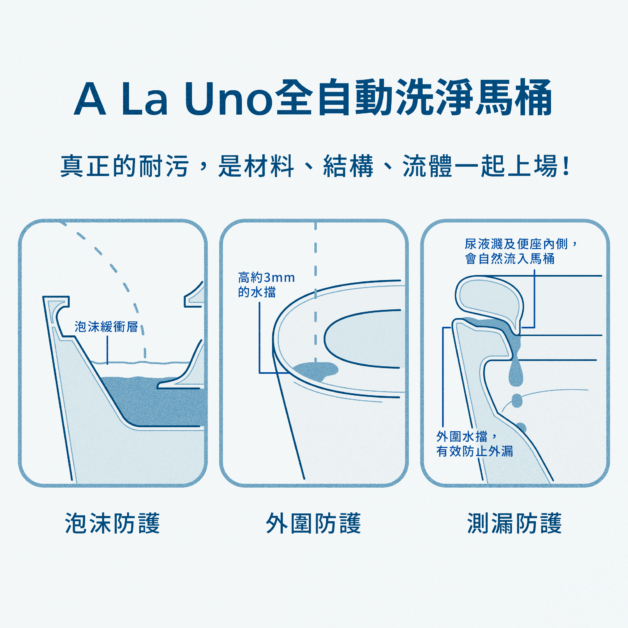
在宏觀結構上,A La Uno 全自動洗淨馬桶採用無水箱沖水與便器、溫水洗淨便座一體成型設計,減少傳統水箱與座體之間的結構層次及接縫,並搭配可動迴轉式排水系統完成沖洗。更貼心的是其「三重防護」設計:

  • 泡沫防護:在水面上製造一層充沛的泡沫緩衝層,有效抑制男性站立小便時的尿液與污水飛濺;
  • 外圍防護:馬桶邊界特別設計了高約 3mm 的水檔,防止液體延著外壁滴落至地板;
  • 測漏防護:便座與馬桶本體採用不外露的防護設計,避免液體從縫隙飛濺滲漏。
Panasonic A La Uno 全自動洗淨馬桶

3. 動態流體層:雙效泡沫洗淨、漩渦水流與 nanoe™ X

當污垢降落在馬桶內壁時,A La Uno全自動洗淨馬桶 的動態流體科技便接手進行徹底打掃。其「雙效泡沫洗淨」會先釋放直徑約 5mm 的「毫米泡沫」包裹並帶走大塊髒污,再透過直徑約 60微米的「微米泡沫」深入微觀縫隙,徹底溶解殘餘的油脂與細微污垢。接著,配合高度清潔力的「漩渦型強力水流」,利用旋轉產生的流體剪切力,一口氣將附著力已被削弱的污垢剝離並沖走。此外,Panasonic A La Uno 全自動洗淨馬桶還搭襯了 nanoe™ X 健康科技,釋放氫氧離子有效抑制異味與髒污,維持空氣與內壁的良好衛生狀態。

科技讓生活變輕鬆,但物理法則依然誠實

從材料化學的低表面能設計,到微觀幾何的附著點控制,再到流體力學的水流沖刷,一座現代抗污馬桶的演進,縮影了人類如何運用基礎科學來解決日常生活痛點的智慧。

我們習慣將衛生清潔想像成一場與細菌髒污的硬碰硬死鬥。然而,A La Uno全自動洗淨馬桶 等現代衛浴技術的突破,展示了材料科學的另一種聰明思維:不靠強酸強鹼硬打,而是透過物理與化學邏輯,將「污垢固著」的機率降到最低。

-----廣告,請繼續往下閱讀-----

當材料科學與現代衛浴技術結合,刷馬桶不再是一件令人頭痛的辛苦瑣事。透過這些前沿科技的加持,我們得以從繁重的家務勞動中解放,享受更加乾淨、舒適且有品質的日常生活。

*1 參考論文:A metallic anti-biofouling surface with a hierarchical topography containing nanostructures on curved micro-riblets

*2 參考論文:Brushing up functional materials

-----廣告,請繼續往下閱讀-----
文章難易度

討論功能關閉中。

鳥苷三磷酸 (PanSci Promo)_96
251 篇文章 ・ 321 位粉絲
充滿能量的泛科學品牌合作帳號!相關行銷合作請洽:contact@pansci.asia

0

0
0

文字

分享

0
0
0
AI 進雞舍,感測器顧豬場:科技如何成為畜牧業的最佳幫手?
鳥苷三磷酸 (PanSci Promo)_96
・2026/09/05 ・3583字 ・閱讀時間約 7 分鐘

從仰賴人力巡視、憑經驗判斷,到導入感測、影像辨識、聲音分析與 AI,智慧畜牧正逐步以數據支撐養殖決策。(圖片提供:Shutterstock)

過去,養雞農得在半夜走進雞舍,靠耳朵分辨雞隻有沒有出現「囉音」(呼吸道疾病的特有聲音);但農民時間有限,一天頂多進雞舍巡三次,而打噴嚏、咳嗽這類異常聲音,又常和背景噪音太相似、不夠明顯,「漏聽」幾乎在所難免。

如果有一套系統能全天候守在雞舍,不僅聽見異常聲音,還能透過影像觀察雞隻狀態、同步記錄體重,情況會不會有所不同?這正是「智慧監測走進畜牧業」的真實場景。

透過感測、影像辨識、聲音分析與 AI,畜牧養殖管理,已經逐步從仰賴人力巡視、憑經驗判斷,轉向以數據支撐的決策;智慧畜牧不只能提高生產效率,也能改善動物福利與整座牧場的生物安全。

本文從家禽到豬隻,採訪兩位長期投入智慧畜牧管理的研究者:國立中興大學生物產業機電工程學系蔡燿全副教授以及國立臺灣大學生物機電工程學系郭彥甫教授,探討科技如何成為畜牧業的最佳助手。

-----廣告,請繼續往下閱讀-----
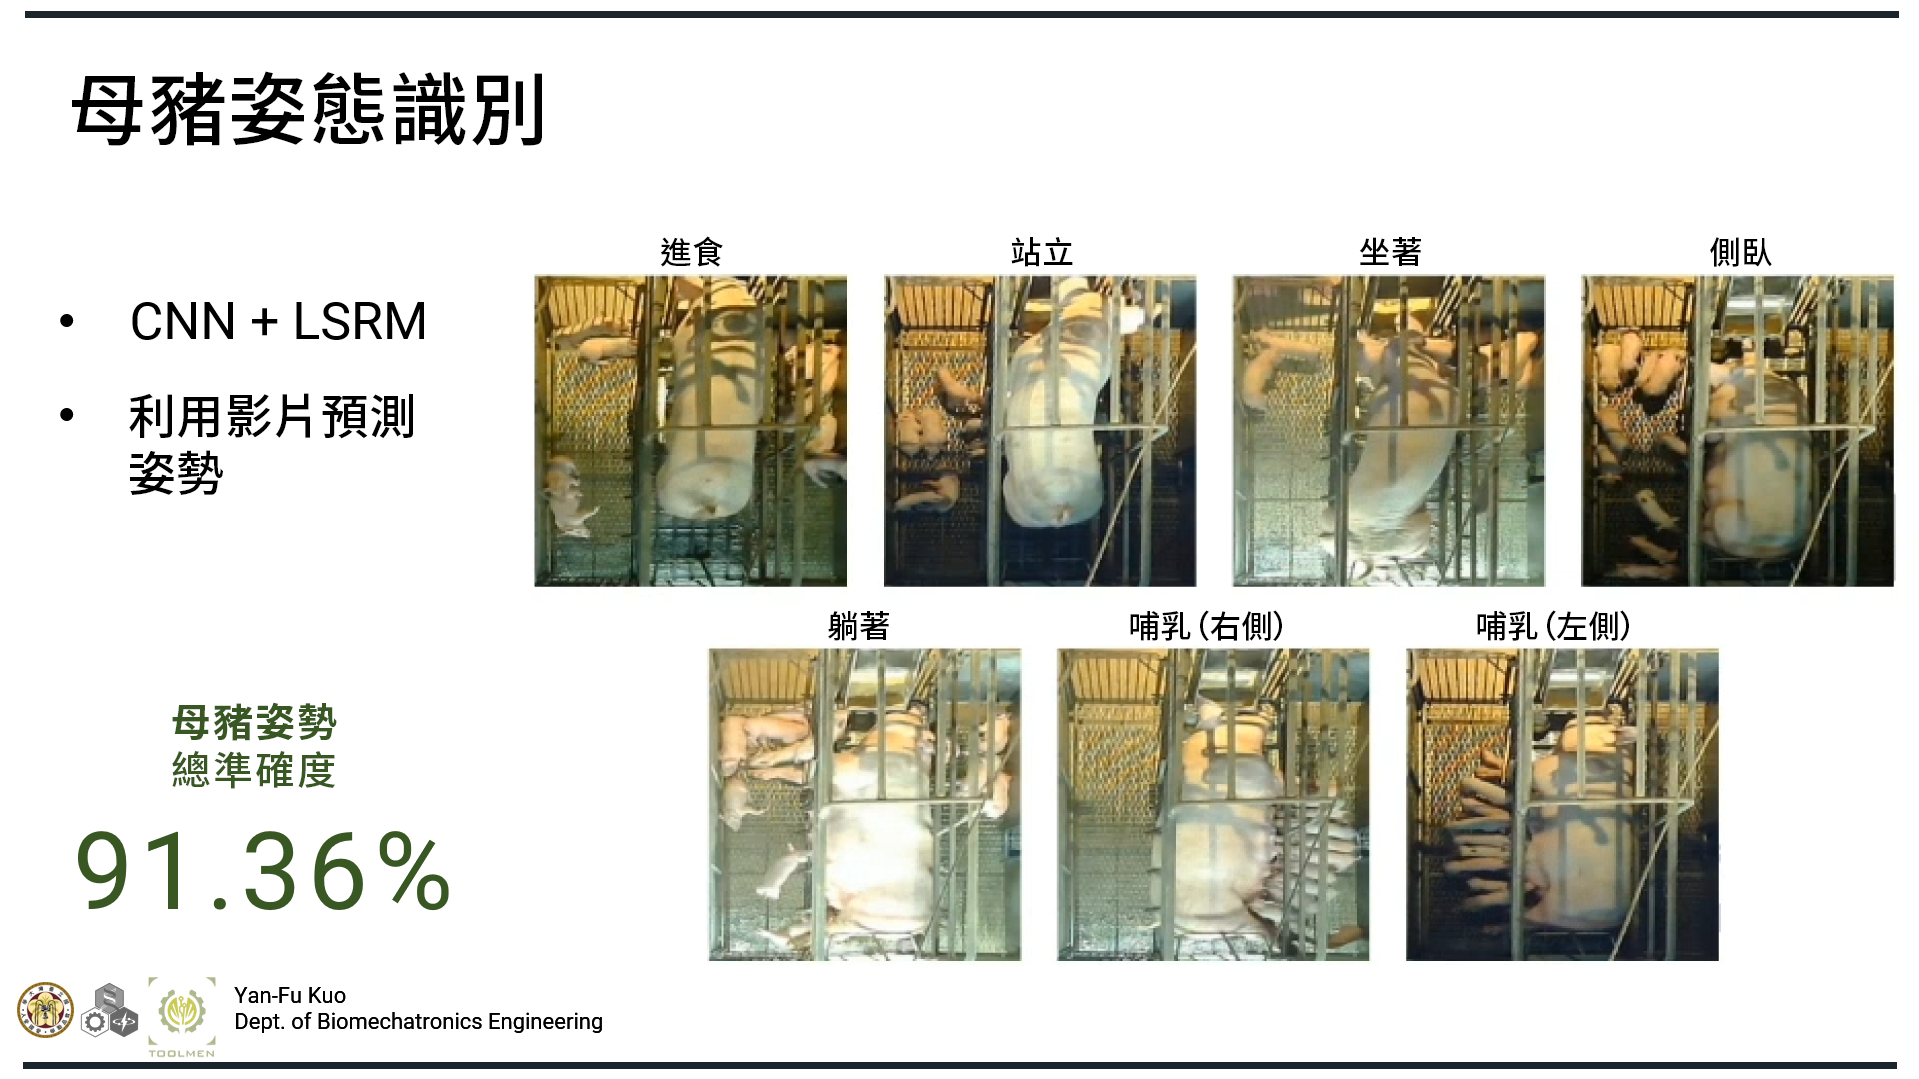
透過機器視覺與深度學習,系統能辨識母豬的姿態,量化進食、站立與哺乳時間,協助豬農及早發現健康異常。(圖片提供:臺灣大學生物機電工程學系郭彥甫教授)

科技接手觀察,補上人力巡視極限

「如何客觀量化健康指標,其實相當困難。」蔡燿全副教授指出,人工巡視的限制,在於「人不可能一直在現場」。以雞舍為例,雞隻體重反映健康狀況,但用「肉眼估算」並不精準,原因出在羽毛會隨當下溫濕度蓬鬆變化;至於雞隻的消化道疾病,則要看肛門與糞便,但「異常聲音」要在夜深人靜的半夜靠「人耳」去分辨,這些都是雞農單靠人力會存在的侷限。

養豬也是。郭彥甫教授指出,過去豬農評估一欄豬的健康狀態,多半是走進去、用肉眼看一下,母豬花多少時間吃料、站立、有沒有在哺乳,無法精確量化判讀。

靠肉眼、人耳判讀,既消耗人力、又不夠精準,因此,智慧畜牧把這些工作交給機器,透過感測器接手觀察,目標在於「及早發現」。

以雞舍為例,機器讀的是「身體徵象」。

-----廣告,請繼續往下閱讀-----

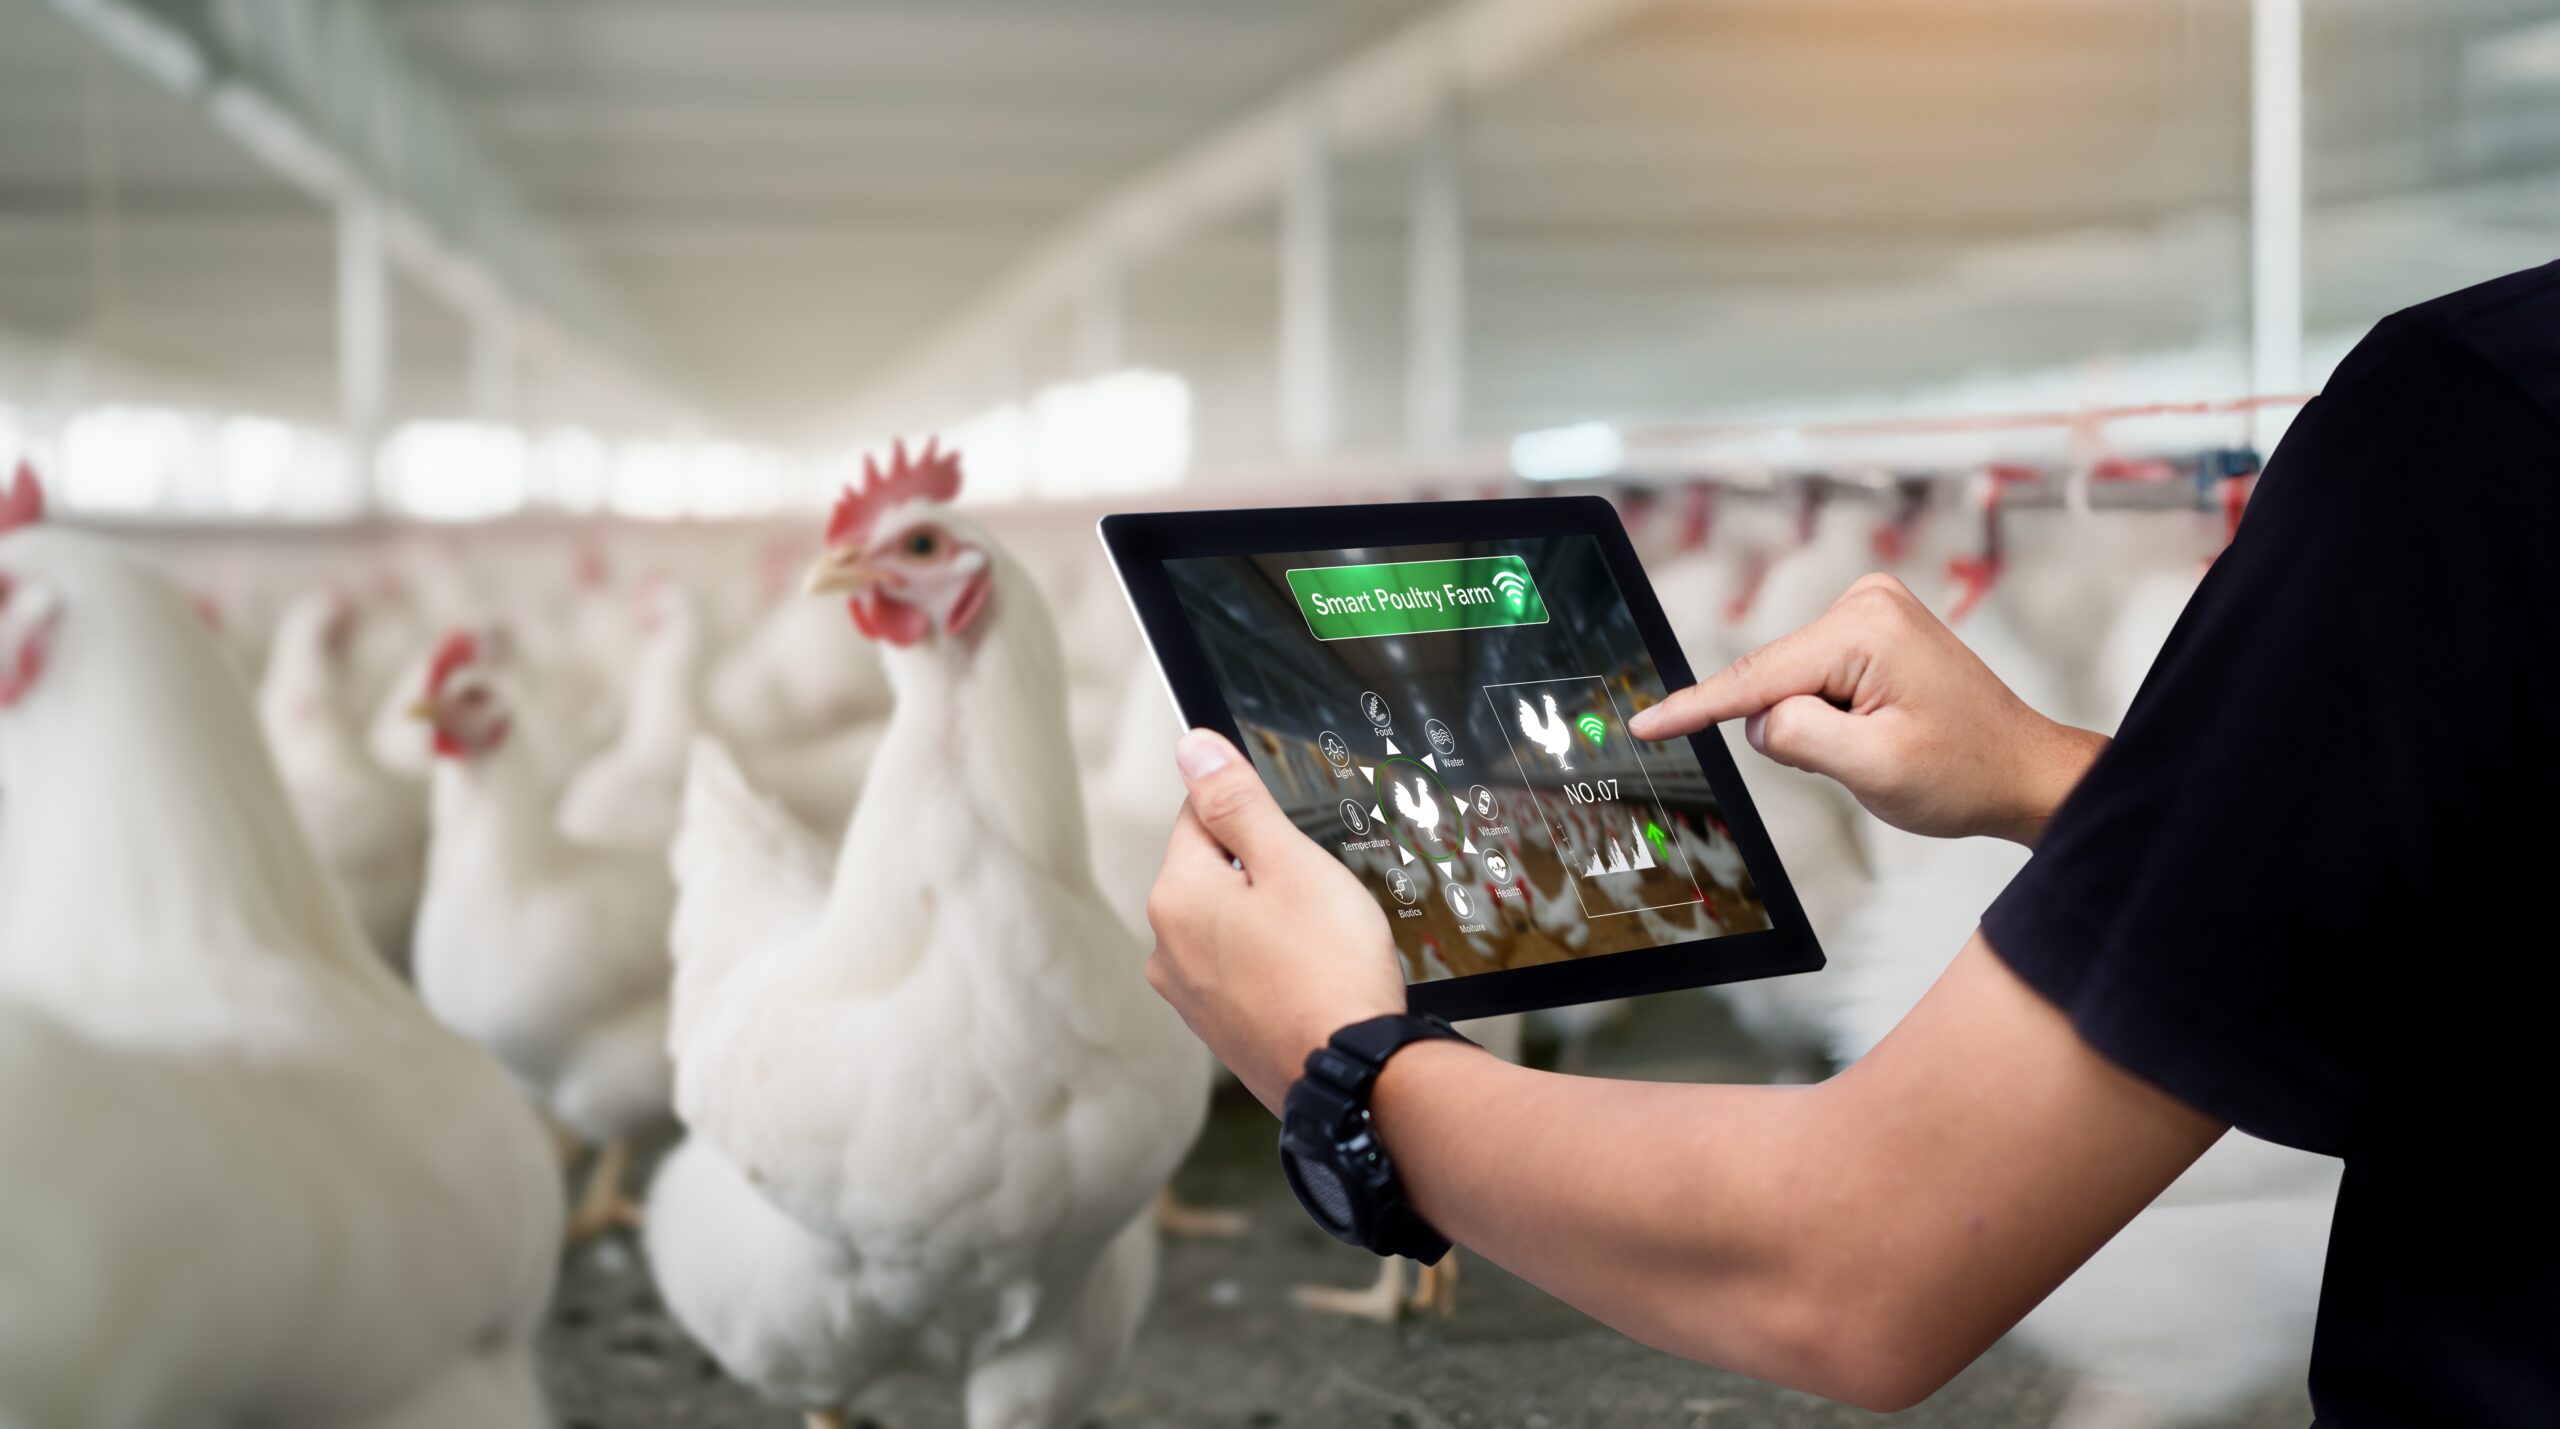
蔡燿全副教授指出,透過「家禽監測系統」,在雞舍裝設麥克風、攝影機與秤重平臺,把叫聲、雞冠與雞眼的顏色、體重,連同溫濕度、風速、氣體等環境資料,一併轉成可判讀的數據。

以體重為例,當雞隻走上秤重平臺,秤出幾隻的總體體重後,平台上方的攝影機,再以AI影像辨識方式,辨識出秤重平台上的雞隻數量,進而換算出雞隻的平均體重,更進一步的做法是,只要在雞舍中央架一臺主機,建立「影像輪廓對應實際重量」的關係,雞舍的其餘角落,只需由上往下拍的攝影機(不必裝設秤重平臺),單靠影像就能推算體重。這也同步解決了動物福利的問題:不必再人工抓雞懸掛量重,對雞隻的干擾降到最低。

在豬舍方面,機器讀的則是「行為與姿態」的動態變化。

郭彥甫教授指出,只要在母豬分娩欄後方架設攝影機,以機器視覺與深度學習,辨識母豬的姿態,量化牠花多少時間進食、站立與哺乳,同時逐隻追蹤欄內仔豬的移動,把狀態分成哺乳、休息與活動三類。當母豬把乳頭壓住、遲遲不讓仔豬吸奶,又不太進食,系統就能標記出這頭母豬已接近生病,整欄仔豬可能跟著吃不到奶、活動力下降。這些畫面,都讓長期被關在窄欄、行動受限的母豬處境,能夠直接被機器紀錄、透過數據化被豬農看見。

-----廣告,請繼續往下閱讀-----

專家教會 AI 讀懂異常,監測從記錄升級為預警

但機器「看得到」只是第一步,「讀得懂」則要靠人與 AI 協作。

以豬舍的應用場景為例,郭彥甫教授指出,AI的機器學習過程,得先由「人」在影像裡,把豬一隻一隻單獨標註起來,累積上千張影像之後,提供給AI學習、訓練,確保AI能夠「讀懂」之後,之後就由機器接手,自動辨識每一隻豬;例如有些小豬在吃飼料、有些在喝水、有些在打架、互咬;郭彥甫教授指出,這套AI 辨識仔豬「日常行為」的準確率已達到91.36%,等於在100隻仔豬中,AI就能精準判讀出91.36隻的行為模式。

雞舍的場景也是同樣邏輯。蔡燿全副教授解釋,透過預先架設機器在雞舍,進行現場錄音,接著以濾波去掉雜訊、把聲音切成小段,再請專家逐段標註,哪些是正常叫聲、哪些是異常囉音,取出聲紋特徵之後,再餵給AI機器學習,訓練出辨識模型。

當機器學會判讀後,監測的價值就能直接從「記錄」,升級為「預警」。

-----廣告,請繼續往下閱讀-----

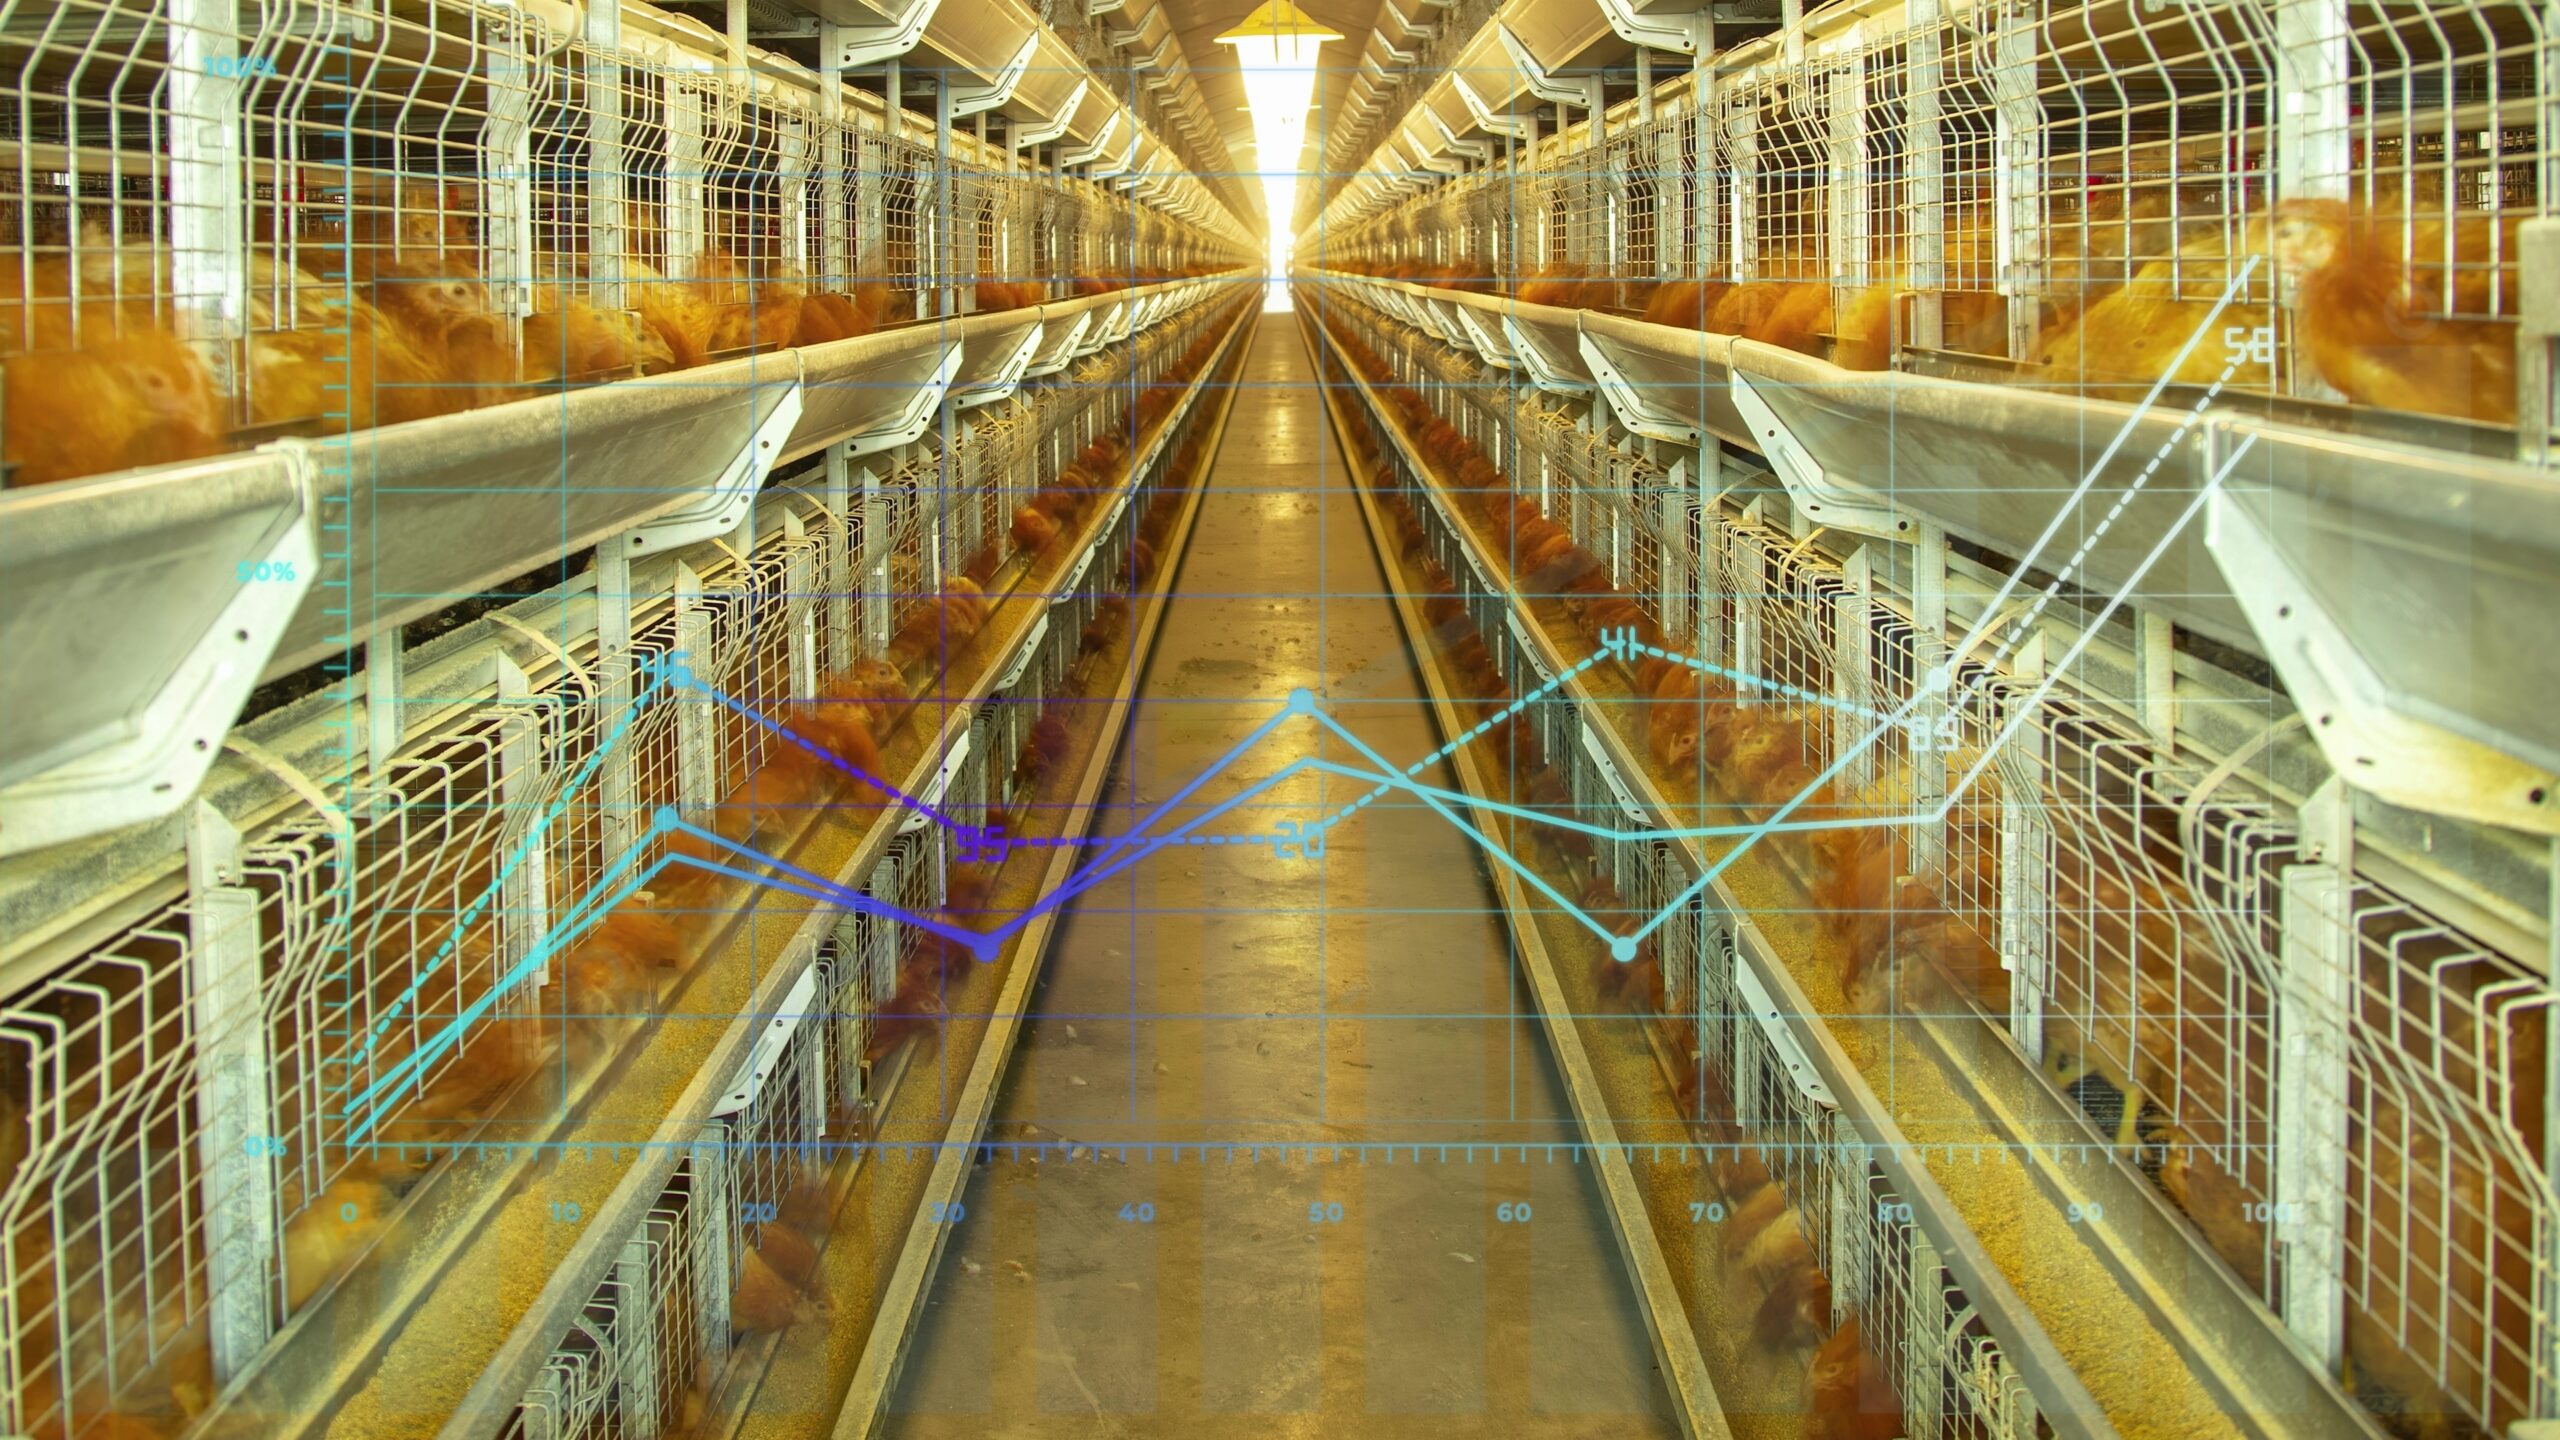
舉例來說,雞舍的聲紋辨識系統,由於是24小時錄音,在農民尚未察覺、還沒記錄到異狀之前,系統就先發出「偵測到異音」的預警,不會等到農民到現場查看才發現。此外,影像辨識系統則可以預先偵測到人眼較難察覺的雞眼異常(雞眼異常後2至3天會出現較高死亡率),等於替農民爭取到提早3天處置的黃金時間。

預警換來實際效益。蔡燿全副教授表示,根據合作雞農的回饋,導入這項系統之後,育成率可提升約3%,因為透過系統24小時不間斷監控,農民更能做到「及早發現、及草治療」,提高雞隻「從飼養到出貨」生命週期的完整性。此外…….傳播途徑。蔡耀全副教授補充,傳統雞隻育成率大約落在80%,導入系統這幾年來,育成率持續提升,近年來已經逐步成長至85%至87%。此外,因為農民不再需要頻繁進出雞舍,也切斷了病原透過人腳、野鳥糞便帶入的傳播途徑。蔡耀全副教授補充,傳統雞隻育成率大約落在80%,導入系統這幾年來,育成率持續提升,近年來已經逐步成長至85%至87%。

豬舍也是。郭彥甫教授指出,量化母豬的姿態與哺乳行為,能夠提早判斷牠是否接近生病,另一方面,系統對仔豬群體活動力的追蹤,則讓農民能夠更早察覺「一頭母豬不好、整欄仔豬跟著受影響」的連鎖效應,進而提早做出相對應的準備措施。 科技帶來的好處,除了提前預警,減少人為疏漏,當農民的巡視工時下降、勞動強度減輕,也能間接讓更多青年農民,願意回鄉接手畜牧場。

雞舍聲紋辨識系統可 24 小時錄音,在農民察覺異狀前發出預警,影像辨識也能提早發現人眼較難察覺的雞眼異常。(圖片提供:Shutterstock)

技術到位、市場未到,智慧畜牧的應用挑戰

然而,儘管智慧畜牧的技術持續進步,但要真正落地應用並普及化,目前仍有待跨越的門檻。

-----廣告,請繼續往下閱讀-----

「因為農民沒有 IT 部門。」蔡燿全副教授點出了智慧畜牧最大的門檻:推廣難度高。

他解釋,老一輩農民對科技熟悉程度較低,一旦網路不穩、甚至插頭沒插上的小狀況,原廠可能就得親自跑一趟畜牧場,服務成本相當高,再加上臺灣市場規模有限,負責落地推廣、技術轉移的農業科技公司,意願自然不高。

此外,「農民投入意願」也是一大門檻。「如果這個科技一定可以幫他賺到錢,他就會樂意接受。」郭彥甫教授觀察,豬農評估導入系統的關鍵,在於能不能幫他「賺到更多錢」,而非只是「節省時間和勞力」,「如果只是省下勞力,農民多半會傾向自己來、或是另外聘請人力。」臺灣雖然在2020年就從口蹄疫除名,但近年來面對周邊國家持續存在的非洲豬瘟等疫情風險,豬農對外部人員(智慧農業團隊、農業科技廠商等)進出格外謹慎,都讓智慧畜牧的應用落地,還需要更多溝通與推廣。

最後一道判斷留給人,「資料治理」智慧畜牧下一步

換句話說,智慧畜牧的技術本身,其實已經備妥,唯獨產業與市場的節奏,還需要時間跟上。

-----廣告,請繼續往下閱讀-----

從雞舍到豬場,感測與 AI 接手了「看」這件過去只能靠人力與經驗撐著的工作,效率、動物福利與疫病防線,也因此被重新畫過一遍。

值得一提的是,兩位研究者不約而同都將「最後一道判斷」留給了人:雞隻該不該投藥、母豬難產怎麼處置,這類牽涉責任的決定,仍由農民與獸醫拍板,AI 負責的是更精準的監測、讓異常更及早被發現。

隨著愈來愈多養殖現場,開始累積這些數據,郭彥甫教授預測,「資料治理」將是畜牧業下一步的趨勢。他解釋,當養殖場規模擴大、不常親臨現場的經理人將更依賴簡單直觀的報表,掌握場內狀況;而這些累積下來的數據,還能推估產量、預估禽隻出場時機,同時對接市場價格,做出更合適的決策。

資料來源

-----廣告,請繼續往下閱讀-----
  1. 中興大學生物產業機電工程學系蔡燿全副教授
  2. 臺灣大學生物機電工程學系郭彥甫教授

原文連結:https://pse.is/9k7pkt

-----廣告,請繼續往下閱讀-----

討論功能關閉中。

0

4
0

文字

分享

0
4
0
露兜樹象鼻蟲的身世之考察——分類學家偵探事件簿(四)
蕭昀_96
・2023/12/25 ・3950字 ・閱讀時間約 8 分鐘

-----廣告,請繼續往下閱讀-----

一般大眾或甚至其他領域生物學家們,對於基礎生物分類學家的刻板印象,無非是常常在顯微鏡下進行形態解剖比較來鑑定物種、描述並發表新物種,或者常常東跑西跑去採集標本,頂多是抽取遺傳物質進行 DNA 分析。然而一位稱職的分類學家,為了搞清楚物種學名的分類地位,將整個命名系統修訂成一個穩定並適合大家使用的狀態,往往需要做大量的歷史文獻,造訪各大博物館並進行模式標本考察,其中的繁瑣和複雜程度,往往令人出乎意料。

再讓我們複習一次模式標本是什麼和其重要性?

如果有閱覽過這系列的文章便會很清楚的知道,模式標本是物種發表時的實體存證,是學者對分類地位有疑慮時,用以判別的客觀證據。每個物種都有其模式標本,而每個屬也有其模式物種,是判定該屬別的決定性物種,模式種和模式標本是進行物種與屬別層級的基礎分類研究時,不可或缺的重要資訊。

這個故事的主角是一類來自南亞和東南亞的露兜樹象鼻蟲,本文將講述其模式標本和背後歷史脈絡的考察,以及我們對於分類處理過程的案例分享。

分布於南亞、東南亞的露兜樹象鼻蟲和研究緣起

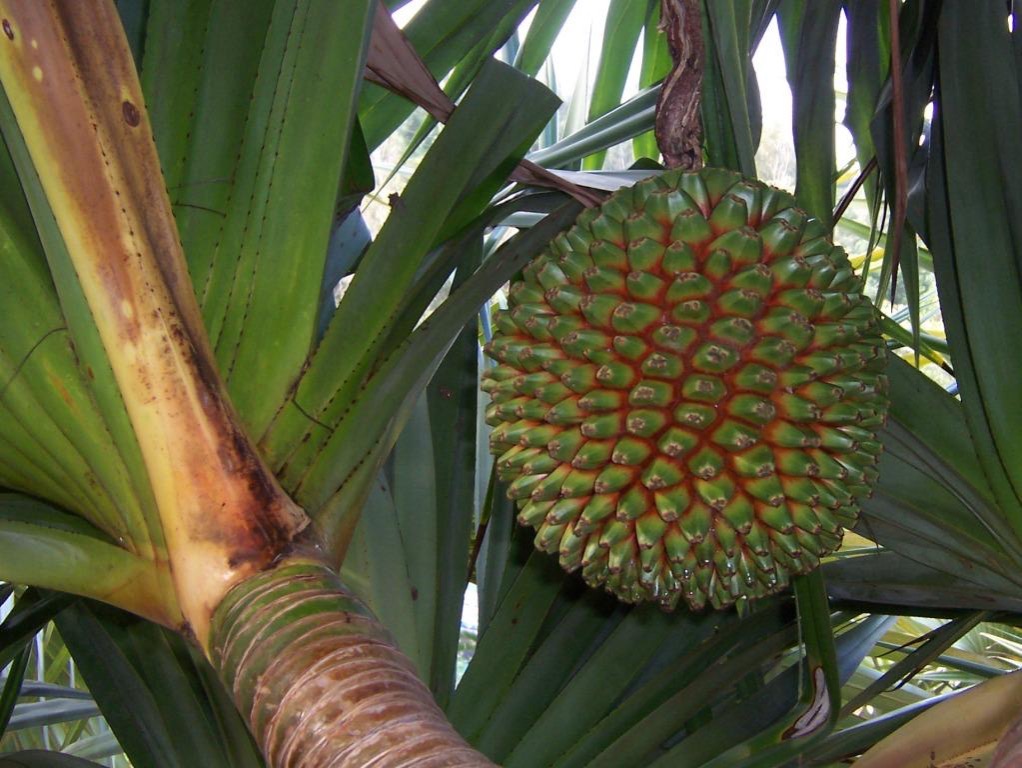
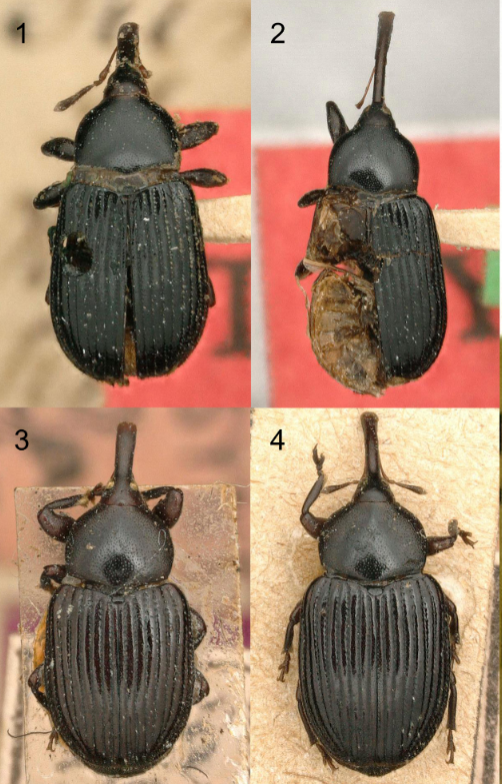
露兜樹科(Pandanus)為分布於東半球的亞熱帶及熱帶地區的灌木或喬木植物,其中林投(Pandanus tectorius)具有抗風、耐鹽的特性,是常見的海岸防風定砂植物,而俗稱斑蘭葉(pandan)的七葉蘭(Pandanus amaryllifolius),則是東南亞常見的料理與糕點製作材料,而南亞和東南亞的露兜樹上棲息著一群黑色扁平的小型象鼻蟲——露兜樹象鼻蟲(Lyterius)。

-----廣告,請繼續往下閱讀-----
露兜樹是東半球的亞熱帶及熱帶地區的灌木或喬木植物。(攝/B.navez from Wikipedia)
小小扁扁的露兜樹象鼻蟲(Lyterius)是與露兜樹有伴生關係的特別物種。(圖/論文原文)

而故事的緣起可追溯到 2022 年,當時筆者正在澳洲進行博士論文題目「澳洲蘇鐵授粉象鼻蟲的多樣性與演化」的研究,我們意外地發現澳洲的蘇鐵授粉象鼻蟲與東南亞產的露兜樹象鼻蟲親緣關係接近,因此我們便想進一步探究本類群的分類。在我們初步搜索模式標本時,我們驚奇地發現德國象鼻蟲學者延斯・普雷納博士 Dr. Jens Prena 似乎曾經有研究過這類象鼻蟲,出於好奇,我們聯繫了普雷納博士,進而開啟了本類群錯綜複雜的分類歷史考察之旅。

露兜樹象鼻蟲分類研究的現存問題

首先露兜樹象鼻蟲的分類問題分成兩個面向,一個是屬別層級的,而另一個是物種層級的。屬別層級的問題比較簡單,我們發現露兜樹象鼻蟲屬有三個相關的屬別,分別為 Lyterius Schönherr, 1844、Barisoma Motschulsky, 1863 和 Plaxes Pascoe, 1885,根據牠們形態的相似性和地理分布的重疊,我們認為牠們應該被合併成單一屬別,也就是說只要我們確認三個屬別的模式種都是屬於同一個屬別後,那自然我們就能依照優先權原則,把 1863 年發表的 Barisoma 和 1885 年發表的 Plaxes 處理為最早發表的 Lyterius 的同物異名。

但是!分類學研究最困難的就是這個但是!

我們雖然追蹤到 Barisoma 和 Plaxes 的模式種和其模式標本,但是 Lyterius 的模式種問題,卻將這個研究的難度拉向了另一個層面——也就是物種層級的問題。

模式標本來源和流向超級複雜的 Lyterius

Lyterius 這個屬別是由瑞典昆蟲學家卡爾・約翰・舍恩赫爾(Carl Johan Schönherr)於 1844 年所提出,並以 Rhynchaenus musculus Fabricius, 1802,這個 1802 年由丹麥昆蟲學家約翰・克里斯蒂安・法布里丘斯(Johan Christian Fabricius )所發表的種類作為模式物種。他的合作對象瑞典昆蟲學家卡爾・亨利克・博赫曼(Carl Henrik Boheman)也在同一本書中使用了 Lyterius musculus (Fabricius, 1802) 這個學名組合,同時他將德國昆蟲學家弗里德里希・韋伯(Friedrich Weber)在 1802 年所描述的 Curculio abdominalis Weber, 1801 也拉進這個屬別,學名組合變成 Lyterius abdominalis (Weber, 1801) ,並且描述一個菲律賓的新物種 Lyterius instabilis Boheman in Schönherr, 1844 。這其中最為複雜難解的,便是 Lyterius musculus (Fabricius, 1802) 和 Lyterius abdominalis (Weber, 1801) 之間的關係了,因為這兩個物種的模式標本來源,都源自於達戈貝爾特・達爾多夫 Dagobert Karl von Daldorff 這位在俄羅斯出生,擁有德裔血統的丹麥博物學家,在 18 世紀末葉任職丹麥東印度公司時,於 1795 年在蘇門答臘的一次採集。

-----廣告,請繼續往下閱讀-----
除了我們常常聽到的荷蘭、英國東印度公司,丹麥也曾經創立了東印度公司。(攝/Wikipedia)

根據我們對於 19 世紀初期的歐洲甲蟲分類歷史文獻的爬梳,達爾多夫在蘇門答臘的標本被帶回歐洲後,應該至少被他贈與或交換給五位學者或機構,而這五位學者就包含剛剛提到的德國昆蟲學家弗里德里希・韋伯(Friedrich Weber),以及丹麥昆蟲學家約翰・克里斯蒂安・法布里丘斯(Johan Christian Fabricius),這兩位顯然同時對這批標本進行分類學研究。

令人存疑的 Lyterius abdominalis 和 Lyterius musculus

因此第一個疑點就是,韋伯和法布里丘斯分別在 1801 年和 1802 年用達爾多夫所採集的同一批蘇門答臘象鼻蟲標本,發表了後來在 1844 年被博赫曼放在同一個屬別的物種 Lyterius abdominalis 和 Lyterius musculus,這讓人很難不懷疑,這兩個名字會不會根本就是同一個物種,這在當年資訊不流通、分類研究還很粗淺的年代,是非常容易發生的事情。

而支持這樣想法的關鍵則有二,首先德國昆蟲學家約翰・卡爾・威廉・伊利格(Johann Karl Wilhelm Illiger)其實在 1805 年的著作中,就已經提出這兩個物種是同一個物種的論點了,然而這項分類處理卻被博赫曼在 1844 年的著作中,不明地忽略了。雖然博赫曼不小心遺漏了伊利格的分類處理,他卻也在看過兩種的模式標本後,在他那 1844 年的著作中,提出了兩個物種只不過是同一個物種的雄蟲和雌蟲的猜想,然而因為他手邊就只有兩隻標本,一隻是雄的 Lyterius abdominalis ,一隻是雌的 Lyterius musculus ,因此他無法下這個決定情有可原,而我們如今已經知道露兜樹象鼻蟲有很明顯的雌雄二形性,雄蟲的口喙比較短,且足部的前腳腿節有明顯的突起,博赫曼的猜想不證自明。

總而言之,從上述的歷史文獻爬梳,我們可以從

-----廣告,請繼續往下閱讀-----
  1. 韋伯和法布里丘斯研究的都是同一批蘇門答臘採集的標本
  2. 同時代的伊利格和後來的博赫曼都直接或間接的認為 Lyterius abdominalis 和 Lyterius musculus 是同一個物種

來推斷,這兩個種類很有可能是同一個種類!

瑞典昆蟲學家卡爾・亨利克・博赫曼。(攝/Wikipedia)

找不到模式標本啊!

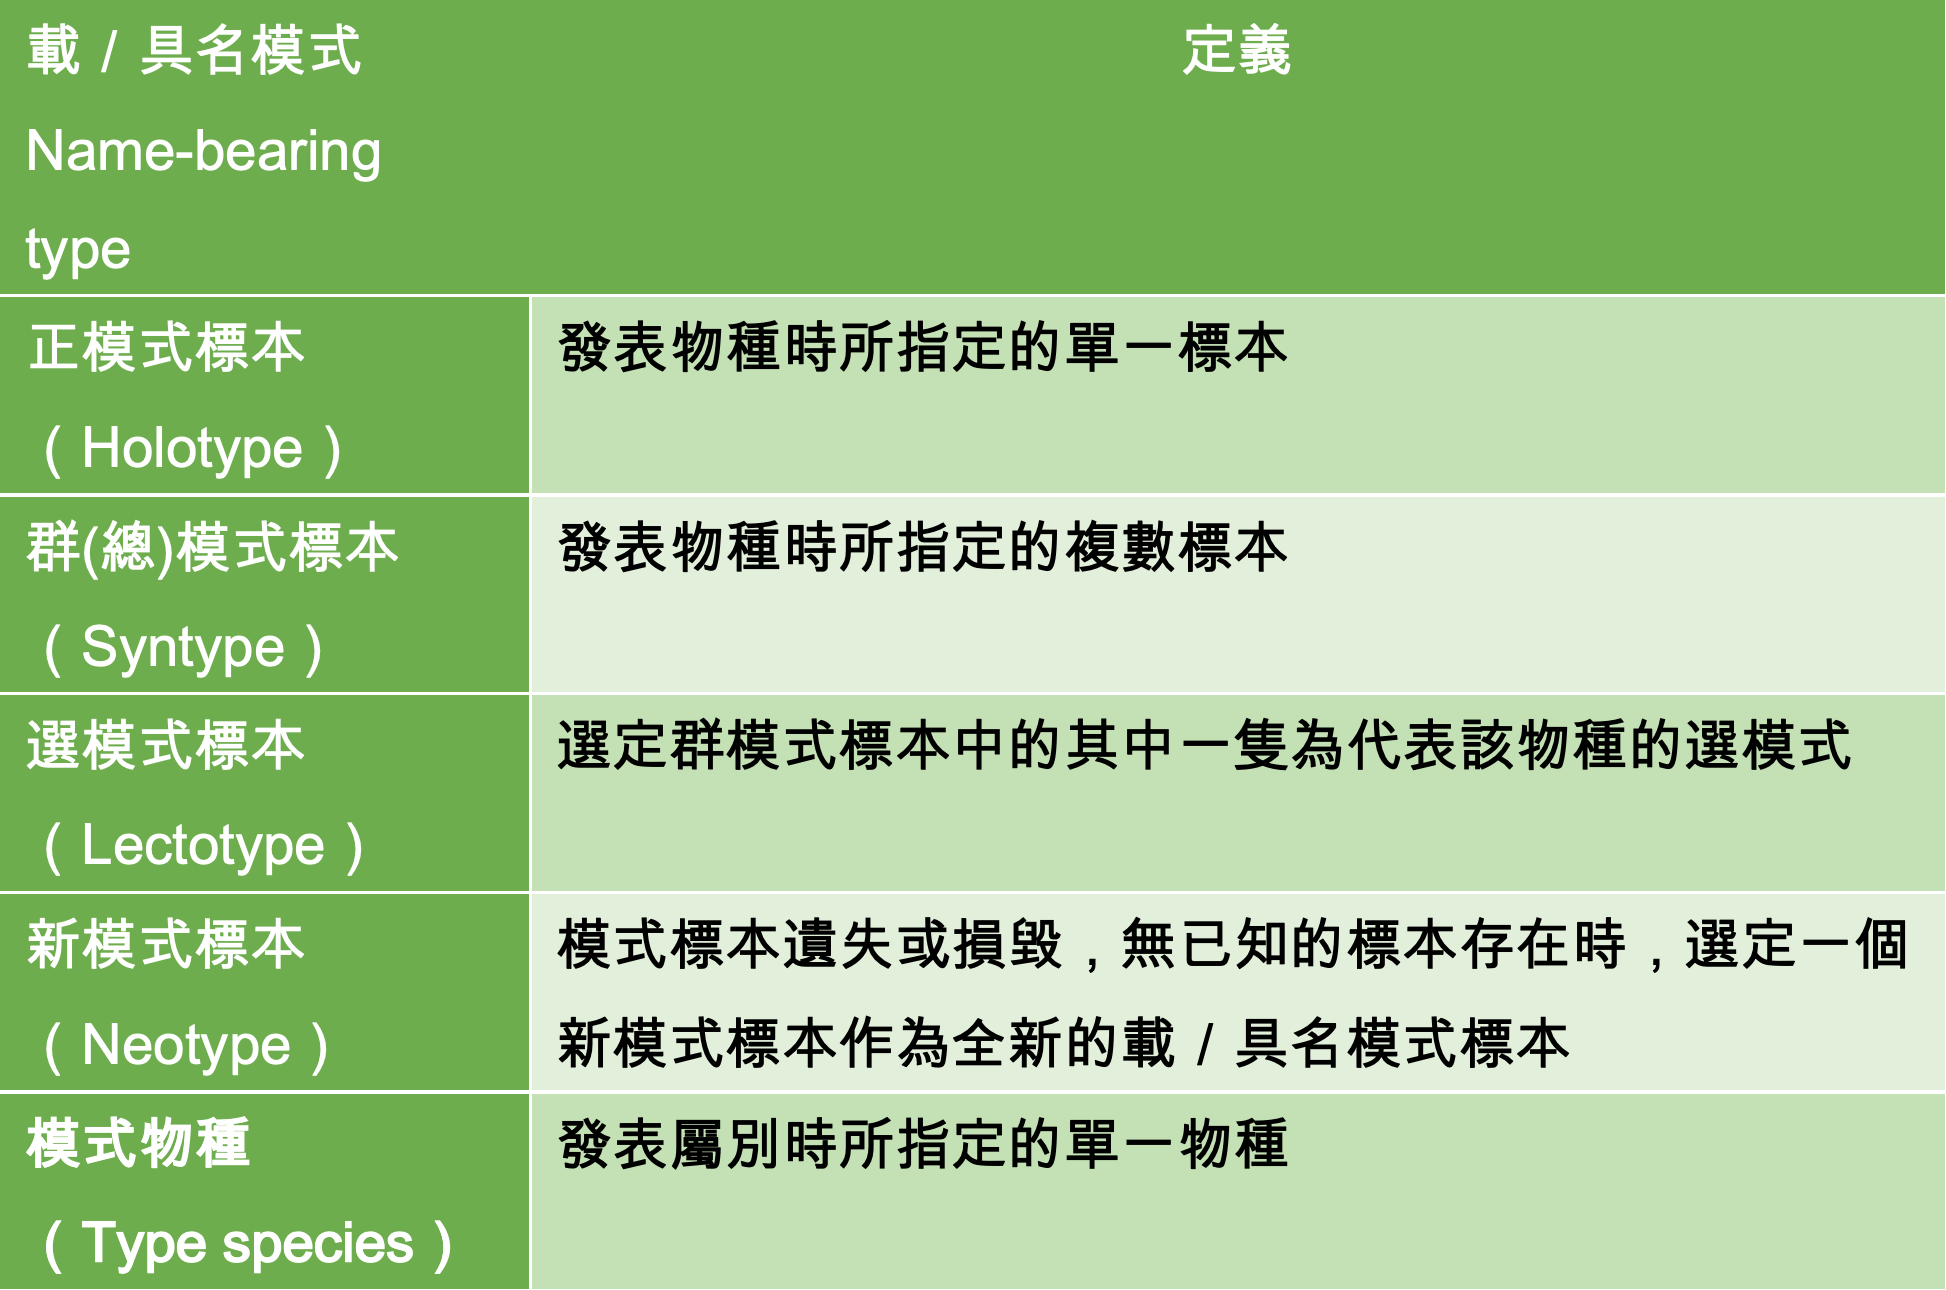
在爬梳大量文獻後,我們同時也造訪歐陸各大標本蒐藏去尋找這些物種的模式標本下落。我們很幸運的在德國基爾的動物學博物館找到兩隻 Lyterius musculus 的總/群模式標本。然而,在尋找 Lyterius abdominalis 模式標本的過程中卻碰了壁,不管是文獻還是實際探訪,幾乎都找不到韋伯收藏的下落,韋伯所發表的模式標本有極大的可能已經遺失了,那要怎麼辦呢?

分類學家的決策

雖然沒辦法找到 Lyterius abdominalis 的模式標本,然而我們從以上的間接證據,可以合理相信 Lyterius abdominalis 和 Lyterius musculus 就是同一個物種。為了最適當的處理分類議題,穩定整個分類命名系統。我們使用了一個技術性的分類學處理,首先我們指定了 Lyterius musculus 的選模式標本,並且我們將「這一個」標本,再次的指定為 Lyterius abdominalis 的新模式標本,這個時候,這兩個學名便產生了動物命名法規上所謂的「客觀同物異名(objective synonym)」關係,相較於分類學家自行主觀認定的同物異名(主觀同物異名 subjective synonym ),客觀同物異名指的是用同一個標本發表不同學名的狀況,這樣這兩個名字無庸置疑的是同物異名關係,只有最早被發表的名字有優先權,因此我們的 Lyterius abdominalis (Weber, 1801) 獲得了優先被使用的地位,也成為露兜樹象鼻蟲屬的模式種。經由這一波操作,我們確立了 Lyterius 的模式和包含的物種,也因此我們終於能進一步處理剛剛提到的 Barisoma 和 Plaxes 的同物異名,最後我們可以大聲的說:露兜樹象鼻蟲屬的學名是 Lyterius Schönherr, 1844 !

番外篇的 Plaxes 模式標本調查

另外一方面,我們在調查 Plaxes 的模式標本時,也發現到其模式種 Plaxes impar Pascoe, 1885 的總/群模式標本散落在英國倫敦自然史博物館、德國柏林自然史博物館、德國德勒斯登森肯堡博物館、義大利熱拿亞自然史博物館、澳洲國立昆蟲館,幾乎涵蓋了半個地球。這些標本可以分為來自婆羅洲砂拉越和蘇門答臘的標本,採自砂拉越的標本無疑是一個獨立的物種,我們也指定砂拉越的總/群模式標本為本種選模式標本。而來自蘇門答臘的標本,無獨有偶地都和 Lyterius abdominalis 是同一個物種,顯然這個物種在蘇門答臘當地是個常見的物種,這又再次加強我們上面提到的,達爾多夫所採集的同一批蘇門答臘象鼻蟲標本應該就只有一種露兜樹象鼻蟲的推測。

-----廣告,請繼續往下閱讀-----

這個研究重新梳理了露兜樹象鼻蟲的分類歷史並考察了歷史文獻和模式標本,最終作出了適宜的分類學處理,為亞洲地區的象鼻蟲研究推進了一步。

  • 本論文日前已經線上刊載於《動物分類群 Zootaxa 》
  • 此文響應 PanSci 「自己的研究自己分享」,以增進眾人對基礎科學研究的了解。

參考資料

  • Prena, J., Hsiao, Y., Oberprieler, R.G. (2023) New combinations and synonymies in the weevil genus Lyterius Schönherr (Coleoptera, Curculionidae), with a conspectus of historical works on Daldorff’s Sumatran beetles. Zootaxa 5380(1): 26-36. https://doi.org/10.11646/zootaxa.5380.1.2
-----廣告,請繼續往下閱讀-----
蕭昀_96
22 篇文章 ・ 17 位粉絲
現任國立中興大學昆蟲學系助理教授,澳洲國立大學生物學研究院博士,在澳洲聯邦科學與工業研究組織國立昆蟲標本館完成博士研究,曾任國立臺灣大學生態學與演化生物學研究所博士後研究員、科博館昆蟲學組蒐藏助理。研究興趣為鞘翅目(甲蟲)系統分類學和古昆蟲學,博士研究主題聚焦在澳洲蘇鐵授粉象鼻蟲的系統分類及演化生物學,其餘研究題目包括菊虎科(Cantharidae)、長扁朽木蟲科(Synchroidae)、擬步總科(Tenebrionoidea)等,不時發現命名新物種,研究論文發表散見於國內外學術期刊 。
繁 简